W poprzednim artykule1 rozpocząłem serię czterech odpowiedzi skierowanych do youtubera Dave’a Fariny (znanego jako „Professor Dave”), odnoszących się do jego filmu2, w którym omawia trzy książki doktora Michaela Behego – Czarną skrzynkę Darwina, Granicę ewolucji oraz Dewolucję3. W niniejszym tekście skupię się na uwagach pana Fariny dotyczących wici bakteryjnych.
Farina zarzuca Behemu „nieuczciwe posługiwanie się terminologią związaną z maszynami”, w tym takimi określeniami jak „silnik zaburtowy”, „wał napędowy”, „przegub uniwersalny”, „tuleje łożyskowe” oraz „sprzęgło i układ hamulcowy”4. W rzeczywistości terminologia ta jest powszechnie stosowana w literaturze naukowej. Nie jest ona bynajmniej czymś charakterystycznym wyłącznie dla Behego. Przeciwnie, w publikacjach dotyczących wici aż roi się od takich określeń jak „silnik”, „wał napędowy”, „przegub uniwersalny”, „tuleja łożyskowa” czy „sprzęgło”5. Równie szeroko rozpowszechnione w kontekście biologicznym jest samo słowo „maszyna”6. Czy Farina zamierza więc oskarżyć o nieuczciwość także całą społeczność badaczy wici bakteryjnych?
Scenariusze kooptacji dotyczące pochodzenia wici bakteryjnych
Z filmu Fariny dowiadujemy się: „Wić, która jedynie drga, zamiast płynnie się obracać, również generowałaby ruch, a zatem mogłaby być faworyzowana przez dobór naturalny”7. Jednakże pilus typu IV, umożliwiający ruch drgający (twitching motility), czyli formę przemieszczania się bakterii po wilgotnych powierzchniach, bardzo różni się od wici. Ruch drgający zachodzi poprzez wysuwanie, zakotwiczanie i cofanie pilusa typu IV, który działa w sposób zbliżony do haka zaczepowego. Wić natomiast obraca się, napędzana siłą protonomotoryczną wynikającą z gradientu protonów w poprzek błony komórkowej. Mechanizmy składania pilusów i wici również znacznie się od siebie różnią.
W filmie pojawia się zarzut, że Behe nie uwzględnia istnienia alternatywnych systemów wici, prostszych niż modelowy system występujący u gatunków z rodzaju Salmonella oraz u Escherichia coli. Jednak fakt, że w jednym systemie brakuje określonego elementu, który w innym systemie jest niezbędny, nie oznacza jeszcze, że ten pierwszy nie dysponuje alternatywnym mechanizmem pozwalającym osiągnąć ten sam rezultat. Najbardziej rygorystyczne ujęcie nieredukowalnej złożoności traktuje ją jako właściwość systemu, do której przyczynia się wiele podfunkcji, przy czym usunięcie choćby jednej z nich sprawia, że cały układ przestaje być funkcjonalny. Należy zauważyć, że każda z tych podfunkcji mogłaby w zasadzie być realizowana przez wiele elementów białkowych. Podobnie pojedynczy składnik białkowy mógłby pełnić więcej niż jedną z tych podfunkcji. Co więcej, to, jakie konkretnie składniki realizują poszczególne podfunkcje, może się różnić w zależności od organizmu. Zatem w systemie nieredukowalnie złożonym istotne nie jest to, jakie konkretnie elementy strukturalne wchodzą w jego skład, lecz raczej niezbędne funkcje, które muszą zostać zrealizowane, aby możliwe było osiągnięcie celu wyższego rzędu.
Ponadto wskazywanie na homologi białek wiciowych nie podważa argumentu opartego na nieredukowalnej złożoności, ponieważ kooptacja tych białek w celu wytworzenia systemu wiciowego wymaga zajścia wielu współwystępujących zmian, by nowy układ mógł w ogóle powstać. Na przykład swoiste dla wici białka nie zapewniałyby przewagi selekcyjnej, dopóki nie zostałyby włączone do systemu wiciowego. Z kolei niezbędne białka pełniące funkcje w innych systemach nie zostałyby włączone do systemu wiciowego, zanim nie pojawiłyby się swoiste dla wici białka. Nie wspominając już o konieczności istnienia komplementarnych powierzchni wiązania między białkami oraz precyzyjnie skoordynowanego systemu montażu, zapewniającego składanie białek we właściwej kolejności.
Odtworzenie wici
W artykule z 2016 roku opublikowanym w „Science and Culture” Behe zapytał:
Dlaczego zatem nie weźmie on [Kenneth Miller] jakiegoś stosownego gatunku bakterii, nie wyeliminuje z niego genów na wić, nie podda naciskowi selekcyjnemu (np. na zdolność do poruszania się) i nie wytworzy eksperymentalnie w laboratorium wici lub jakiegokolwiek innego, równie złożonego systemu? (Wić ma w końcu tylko 30-40 genów, a nie setki, jak twierdzi Miller, więc dobór naturalny mógłby łatwo i szybko ją przeprojektować). Gdyby Miller to zrobił, moje twierdzenia zostałyby całkowicie sfalsyfikowane. Nie uczyni on tego jednak, ponieważ rażąco wyolbrzymia perspektywę osiągnięcia sukcesu na tym polu8.
W swoim filmie Farina skomentował:
Co zabawne, [Behe] najwyraźniej nie zdaje sobie sprawy, że dokładnie taki eksperyment przeprowadzono już rok wcześniej. Oto publikacja. Delecja genu doprowadziła do powstania dwóch pozbawionych wici szczepów bakterii. Następnie poddano je presji selekcyjnej faworyzującej zdolność poruszania się poprzez wyczerpywanie składników odżywczych w kolonii bakterii. W ciągu 96 godzin oba szczepy odzyskały zdolność ruchu za pomocą wici w wyniku dwóch następujących po sobie mutacji punktowych w genach pełniących funkcje niezwiązane z ruchliwością wiciową9.
Jednak artykuł, na który powołuje się Farina, w ogóle czegoś takiego nie dokumentuje10. Nie po raz pierwszy w kontekście tego materiału wideo zastanawiam się, czy faktycznie przeczytał on wskazywane przez siebie teksty. Jedyne, co badacze usunęli u Pseudomonas fluorescens, to białko FleQ – główny regulator ekspresji genów wici. Po kilku dniach inkubacji komórek bakteryjnych na szalkach Petriego bakterie odzyskały zdolność wytwarzania wici. Genetyczną podstawą tej reaktywacji było to, że inne białko pełniące funkcję głównego regulatora, NtrC – strukturalnie podobny homolog FleQ, odpowiedzialny za aktywację genów związanych z metabolizmem azotu – już wcześniej było w pewnym stopniu zdolne do wiązania się również z promotorem, z którym zazwyczaj wiąże się FleQ. Gdy wskutek uszkodzenia regulatora NtrC było produkowane w nadmiarze, mogło stymulować syntezę wici. Konsekwencją tej mutacji była jednak utrata przez komórkę bakteryjną zdolności do regulowania ekspresji genów związanych z metabolizmem azotu. Artykuł w czasopiśmie „The Scientist” opisał te badania następująco:
Choć wici, które wyewoluowały ponownie, umożliwiły bakteriom dotarcie do zasobów pokarmowych znajdujących się w najbardziej odległych częściach szalki Petriego, zdolność ta miała swoją cenę. „Bakterie, które zaczęły znacznie lepiej pływać, znacznie gorzej radziły sobie z regulacją metabolizmu azotu” – powiedziała Johnson. Dodała jednak: „czasem korzyść może być tak wielka, że warto ponieść ten koszt, ponieważ w przeciwnym razie organizm ginie”11.
Zatem, wbrew twierdzeniom przedstawionym w filmie Fariny, artykuł ten w żadnym razie nie dokumentuje ewolucyjnego powstania wici bakteryjnej de novo – jest wręcz przeciwnie. Co więcej, Behe zdążył już odnieść się do tej publikacji12.
Problem czasu oczekiwania
W 2004 roku Michael Behe i David Snoke opublikowali artykuł w czasopiśmie „Protein Science”13. Farina wysuwa wobec tej pracy trzy zarzuty. Pierwszy z nich brzmi następująco: „Behe i Snoke stwierdzili, że sekwencja docelowa rzeczywiście wyewoluowała przy całkowicie realistycznych liczebnościach populacji i w całkowicie realistycznych ramach czasowych; co więcej, liczebności te były raczej niewielkie w porównaniu z rzeczywistymi populacjami. Artykuł ten dosłownie dowodzi, że Behe i Snoke się mylili, a mimo to przedstawiają jego wyniki jako swoje zwycięstwo”14. Farina przywołuje zeznania, które Behe złożył jako biegły podczas procesu Kitzmiller v. Dover z 2005 roku:
Zapytany o swój artykuł z 2004 roku Behe milcząco przyznał, że liczebność populacji zastosowana w ich modelu była o rzędy wielkości mniejsza niż w przypadku rzeczywistych populacji bakterii, co skutkowało znacznym niedoszacowaniem tempa, w jakim takie »nieredukowalne« cechy mogłyby ewoluować […] W jednej szczególnie wymownej wymianie zdań Behe przyznał, że istnieje publikacja wskazująca, iż w jednej tonie gleby znajduje się więcej prokariotów niż osobników w populacji uwzględnionej w jego modelu, a przecież gleby na Ziemi jest znacznie więcej niż jedna tona15.
Zarzut ten wynika jednak z błędnej interpretacji artykułu Behego przez Farinę. Jak wyjaśnił sam Behe – i uczynił to w tym właśnie zapisie rozprawy, na który powołuje się Farina – „utworzenie nowego mostka disiarczkowego może wymagać zaledwie dwóch mutacji punktowych. Jednak powstanie innych cech obejmujących wiele reszt aminokwasowych, takich jak miejsca wiązania między białkami, może wymagać większej liczby mutacji”16. Poniższy wykres przedstawia oszacowany przez Behego i Snoke’a czas do utrwalenia (na osi Y) w zależności od liczby substytucji potrzebnych do wyewoluowania nowej cechy (na osi X). Na górnej osi podano wymagane liczebności populacji. Sedno sprawy polega na tym, że wraz ze wzrostem liczby niezbędnych, współzależnych mutacji rosną również wymagana liczebność populacji oraz czas oczekiwania na utrwalenie.
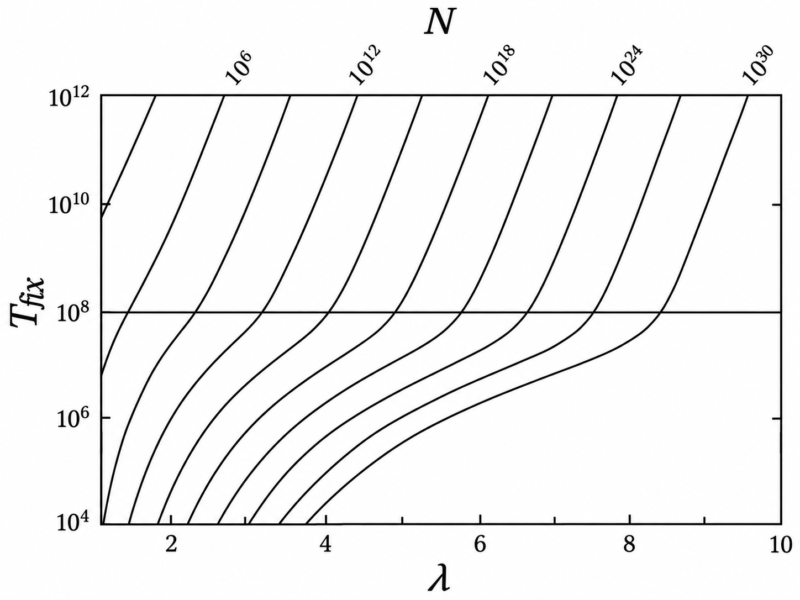
Behe i Snoke wyjaśnili jednak, że w scenariuszu, w którym do powstania nowej cechy potrzebne są trzy substytucje, konieczna jest populacja licząca około 10¹¹ osobników, aby cecha ta mogła utrwalić się w ciągu 10⁸ pokoleń (10⁸ pokoleń zaznaczono na wykresie poziomą linią). Jeśli dana złożona cecha wymagałaby jeszcze większej liczby substytucji, jej utrwalenie wymagałoby znacznie więcej czasu. Gdyby do jej powstania koniecznych było sześć mutacji, średnia liczebność populacji wymagana, by cecha uległa utrwaleniu w ciągu 10⁸ pokoleń, byłaby rzędu 10²² osobników. Biorąc pod uwagę, że 10³⁰ jest wiarygodnym oszacowaniem całkowitej liczby mikroorganizmów na Ziemi, wymagane liczebności populacji bardzo szybko stają się praktycznie nieosiągalne17.
Drugi zarzut brzmi: „W swoim modelu Behe i Snoke dopuścili jedynie mutacje pojedynczych zasad oraz dobór naturalny – bez rekombinacji, bez duplikacji poza tą początkowo założoną i bez żadnych innych zmian ewolucyjnych”18. Autorzy jednak wyraźnie stwierdzają, że „ponieważ zaprezentowany tutaj model nie uwzględnia rekombinacji, można uznać, że otrzymane wyniki odnoszą się przede wszystkim do haploidalnej populacji rozmnażającej się bezpłciowo”19. Natomiast w podsumowaniu swojego artykułu zauważają oni, że „wyniki te odnoszą się również do ewolucji rozmnażających się płciowo organizmów diploidalnych”20, ponieważ duże organizmy wielokomórkowe cechują się nieporównanie mniejszą liczebnością populacji niż bakterie. Skoro ewolucja złożonych cech sprawia trudność mikroorganizmom – przy ich ogromnych liczebnościach populacji i krótkich czasach generacji – to o ileż trudniejsza musi być w przypadku dużych zwierząt? Można wprawdzie odpowiedzieć, że u rozmnażających się płciowo gatunków diploidalnych rekombinacja umożliwia oddzielne pojawianie się neutralnych mutacji w populacji, a następnie ich połączenie w wyniku rekombinacji płciowej. Jednak Christiansen i współautorzy w artykule opublikowanym w czasopiśmie „Theoretical Population Biology” wykazali, że „rekombinacja skraca czas oczekiwania na pierwsze pojawienie się nowej kombinacji genotypowej, lecz efekt ten jest niewielki w porównaniu z wpływem tempa mutacji i liczebności populacji”21.
Na koniec Farina zarzuca autorom, że „z góry określili sekwencję docelową i uznali symulację za »udaną« tylko wtedy, gdy wyewoluowała właśnie ta konkretna sekwencja”22. Ten zarzut nie jest jednak słuszny. W rzeczywistości praca ta dostarcza oszacowań liczby organizmów oraz czasu potrzebnego, by w populacji utrwaliło się wiele współzależnych mutacji (z których żadna sama w sobie nie zapewnia przewagi).
W następnej części odpowiem na zarzuty Fariny wobec książki doktora Behego zatytułowanej Granica ewolucji23.
Oryginał: Answering Farina on Behe’s Work: Bacterial Flagella, „Science & Culture Today” 2023, June 26 [dostęp: 2 X 2026].
Przekład z języka angielskiego: Adam Bechyne
Źródło zdjęcia: Pixabay
Ostatnia aktualizacja strony: 2.10.2026

Chcesz wiedzieć więcej o poglądach Michaela Behego na temat wici bakteryjnych? Zapraszamy do lektury książki Czarna skrzynka Darwina.
Książka dostępna w księgarni Fundacji En Arche.
Przypisy
- Por. J. McLatchie, Odpowiedź na krytykę Fariny wobec prac Behego: nieredukowalna złożoność, tłum. A. Bechyne, „W Poszukiwaniu Projektu” 2026, 29 września [dostęp: 29 IX 2026] (przyp. tłum.).
- Por. D. Farina, Exposing Discovery Institute Part 3: Michael Behe, „YouTube” 2022, September 23 [dostęp: 01 IX 2026].
- Por. M.J. Behe, Czarna skrzynka Darwina. Biochemiczne wyzwanie dla ewolucjonizmu, tłum. D. Sagan, „Seria Inteligentny Projekt”, Fundacja En Arche, Warszawa 2020; tenże, Granica ewolucji. W poszukiwaniu ograniczeń darwinizmu, tłum. Z. Kościuk, „Seria Inteligentny Projekt”, Fundacja En Arche, Warszawa 2020; tenże, Dewolucja. Odkrycia naukowe dotyczące DNA wyzwaniem dla darwinizmu, tłum. A. Baranowski, „Seria Inteligentny Projekt”, Fundacja En Arche, Warszawa 2022 (przyp. tłum.).
- Por. D. Farina, Exposing Discovery Institute Part 3 (przyp. tłum.).
- Por. T. Minamino et al., Molecular Motors of The Bacterial Flagella, „Current Opinion in Structural Biology” 2008, Vol. 18, No. 6, s. 693–701, https://doi.org/10.1016/j.sbi.2008.09.006; S. Johnson et al., Molecular Structure of The Intact Bacterial Flagellar Basal Body, „Nature Microbiology” 2021, Vol. 6, No. 6, s. 712–721, https://doi.org/10.1038/s41564-021-00895-y; A. Kitao, H. Hata, Molecular Dynamics Simulation of Bacterial Flagella, „Biophysical Reviews” 2018, Vol. 10, No. 2, s. 617–629, https://doi.org/10.1007/s12551-017-0338-7; T. Yamaguchi et al., Structure of The Molecular Bushing of The Bacterial Flagellar Motor, „Nature Communications” 2021, Vol. 12, No. 1, numer artykułu: 4469, https://doi.org/10.1038/s41467-021-24715-3; K.M. Blair et al., A Molecular Clutch Disables Flagella in The Bacillus subtilis Biofilm, „Science” 2008, Vol. 320, No. 5883, s. 1636–1638, https://doi.org/10.1126/Science.1157877.
- Por. Y. Sowa, R.M. Berry, Bacterial Flagellar Motor, „Quarterly Reviews of Biophysics” 2008, Vol. 41, No. 2, s. 103–132, https://doi.org/10.1017/S0033583508004691.
- Por. D. Farina, Exposing Discovery Institute Part 3 (przyp. tłum.)
- Por. M.J. Behe, Philosophical Objections to Intelligent Design: A Response to Critics, „Science & Culture Today” 2016, October 27 [dostęp: 01 IX 2026]; tenże, Filozoficzne zarzuty stawiane hipotezie inteligentnego projektu: odpowiedź na krytykę, „Filozoficzne Aspekty Genezy” 2004, tom 1, s. 115–139 [dostęp: 01 IX 2026] (przyp. tłum.).
- D. Farina, Exposing Discovery Institute Part 3.
- Por. T.B. Taylor et al., Evolution. Evolutionary Resurrection of Flagellar Motility via Rewiring of the Nitrogen Regulation System, „Science” 2015, Vol. 347, No. 6225, s. 1014–1017, https://doi.org/10.1126/science.1259145.
- R. Williams, Evolutionary Rewiring, „The Scientist” 2015, May 02 [dostęp: 01 IX 2026] (przyp. tłum.).
- Por. M.J. Behe, Pułapka na Darwina. Michael J. Behe odpowiada krytykom, tłum. D. Sagan, „Seria Inteligentny Projekt”, Fundacja En Arche, Warszawa 2023, s. 245–248 (przyp. tłum.).
- Por. M.J. Behe, D.W. Snoke, Simulating Evolution by Gene Duplication of Protein Features That Require Multiple Amino Acid Residues, „Protein Science” 2004, Vol. 13, No. 10, s. 2651–2664, https://doi.org/10.1110/ps.04802904.
- D. Farina, Exposing Discovery Institute Part 3 (przyp. tłum.).
- Tamże (przyp. tłum.).
- Kitzmiller v. Dover: Day 12, AM: Michael Behe, https://talkorigins.org/faqs/dover/day12am.html [dostęp: 22 IX 2026](przyp. tłum.).
- Por. W.B. Whitman et al., Prokaryotes: The Unseen Majority, „Proceedings of the National Academy of Sciences of the United States of America” 1998, Vol. 95, No. 12, s. 6578–6583, https://doi.org/10.1073/pnas.95.12.657.
- D. Farina, Exposing Discovery Institute Part 3 (przyp. tłum.).
- M.J. Behe, D.W. Snoke, Simulating Evolution by Gene Duplication, s. 2652 (przyp. tłum.).
- Tamże, s. 2661 (przyp. tłum.).
- F.B. Christiansen et al., Waiting With and Without Recombination: The Time to Production of a Double Mutant, „Theoretical Population Biology” 1998, Vol. 53, No. 3, s. 199–215, https://doi.org/10.1006/tpbi.1997.1358 (wyróżnienia w oryginale).
- D. Farina, Exposing Discovery Institute Part 3 (przyp. tłum.).
- M.J. Behe, Granica ewolucji. W poszukiwaniu ograniczeń darwinizmu, tłum. Zbigniew Kościuk, Fundacja En Arche, Warszawa 2020.
Literatura:
1. Behe M.J., Czarna skrzynka Darwina. Biochemiczne wyzwanie dla ewolucjonizmu, tłum. D. Sagan, „Seria Inteligentny Projekt”, Fundacja En Arche, Warszawa 2020.
2. Behe M.J., Odkrycia naukowe dotyczące DNA wyzwaniem dla darwinizmu, tłum. A. Baranowski, „Seria Inteligentny Projekt”, Fundacja En Arche, Warszawa 2022.
3. Behe M.J., Filozoficzne zarzuty stawiane hipotezie inteligentnego projektu: odpowiedź na krytykę, „Filozoficzne Aspekty Genezy” 2004, tom 1, s. 115–139 [dostęp: 01 IX 2026].
4. Behe M.J., Granica ewolucji. W poszukiwaniu ograniczeń darwinizmu, tłum. Z. Kościuk, „Seria Inteligentny Projekt”, Fundacja En Arche, Warszawa 2020.
5. Behe M.J., Philosophical Objections to Intelligent Design: A Response to Critics, „Science & Culture Today” 2016, October 27 [dostęp: 01 IX 2026].
6. Behe M.J., Pułapka na Darwina. Michael J. Behe odpowiada krytykom, tłum. D. Sagan, „Seria Inteligentny Projekt”, Fundacja En Arche, Warszawa 2023, s. 245–248.
7. Behe M.J., Snoke D.W., Simulating Evolution by Gene Duplication of Protein Features That Require Multiple Amino Acid Residues, „Protein Science” 2004, Vol. 13, No. 10, s. 2651–2664, https://doi.org/10.1110/ps.04802904.
8. Blair K.M. et al., A Molecular Clutch Disables Flagella in The Bacillus subtilis Biofilm, „Science” 2008, Vol. 320, No. 5883, s. 1636–1638, https://doi.org/10.1126/Science.1157877.
9. Christiansen F.B. et al., Waiting With and Without Recombination: The Time to Production of a Double Mutant, „Theoretical Population Biology” 1998, Vol. 53, No. 3, s. 199–215, https://doi.org/10.1006/tpbi.1997.1358.
10. Farina D., Exposing Discovery Institute Part 3: Michael Behe, „YouTube” 2022, September 23 [dostęp: 01 IX 2026].
11. Johnson S. et al., Molecular Structure of The Intact Bacterial Flagellar Basal Body, „Nature Microbiology” 2021, Vol. 6, No. 6, s. 712–721, https://doi.org/10.1038/s41564-021-00895-y.
12. Kitao A., Hata H., Molecular Dynamics Simulation of Bacterial Flagella, „Biophysical Reviews” 2018, Vol. 10, No. 2, s. 617–629, https://doi.org/10.1007/s12551-017-0338-7.
13. Kitzmiller v. Dover: Day 12, AM: Michael Behe, https://talkorigins.org/faqs/dover/day12am.html.
14. McLatchie J., Answering Farina on Behe’s Work: Bacterial Flagella, „Science & Culture Today” 2023, June 26 [dostęp: 01 IX 2026].
15. McLatchie J., Odpowiedź na krytykę Fariny wobec prac Behego: nieredukowalna złożoność, tłum. A. Bechyne, „W Poszukiwaniu Projektu” 2026, 29 września [dostęp: 29 IX 2026].
16. Minamino T. et al., Molecular Motors of The Bacterial Flagella, „Current Opinion in Structural Biology” 2008, Vol. 18, No. 6, s. 693–701, https://doi.org/10.1016/j.sbi.2008.09.006.
17. Sowa Y., Berry R.M., Bacterial Flagellar Motor, „Quarterly Reviews of Biophysics” 2008, Vol. 41, No. 2, s. 103–132, https://doi.org/10.1017/S0033583508004691.
18. Taylor T.B. et al., Evolutionary Resurrection of Flagellar Motility via Rewiring of the Nitrogen Regulation System, „Science” 2015, Vol. 347, No. 6225, s. 1014–1017, https://doi.org/10.1126/science.1259145.
19. Williams R., Evolutionary Rewiring, „The Scientist” 2015, May 02 [dostęp: 01 IX 2026].
20. Whitman W.B. et al., Prokaryotes: The Unseen Majority, „Proceedings of the National Academy of Sciences of the United States of America” 1998, Vol. 95, No. 12, s. 6578–6583, https://doi.org/10.1073/pnas.95.12.657.
21. Yamaguchi T. et al., Structure of The Molecular Bushing of The Bacterial Flagellar Motor, „Nature Communications” 2021, Vol. 12, No. 1, numer artykułu: 4469, https://doi.org/10.1038/s41467-021-24715-3.